LA CELLULA: UNITÀ FONDAMENTALE DELLA VITA

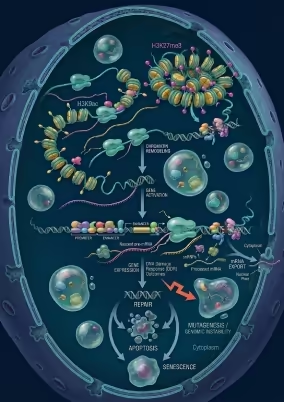
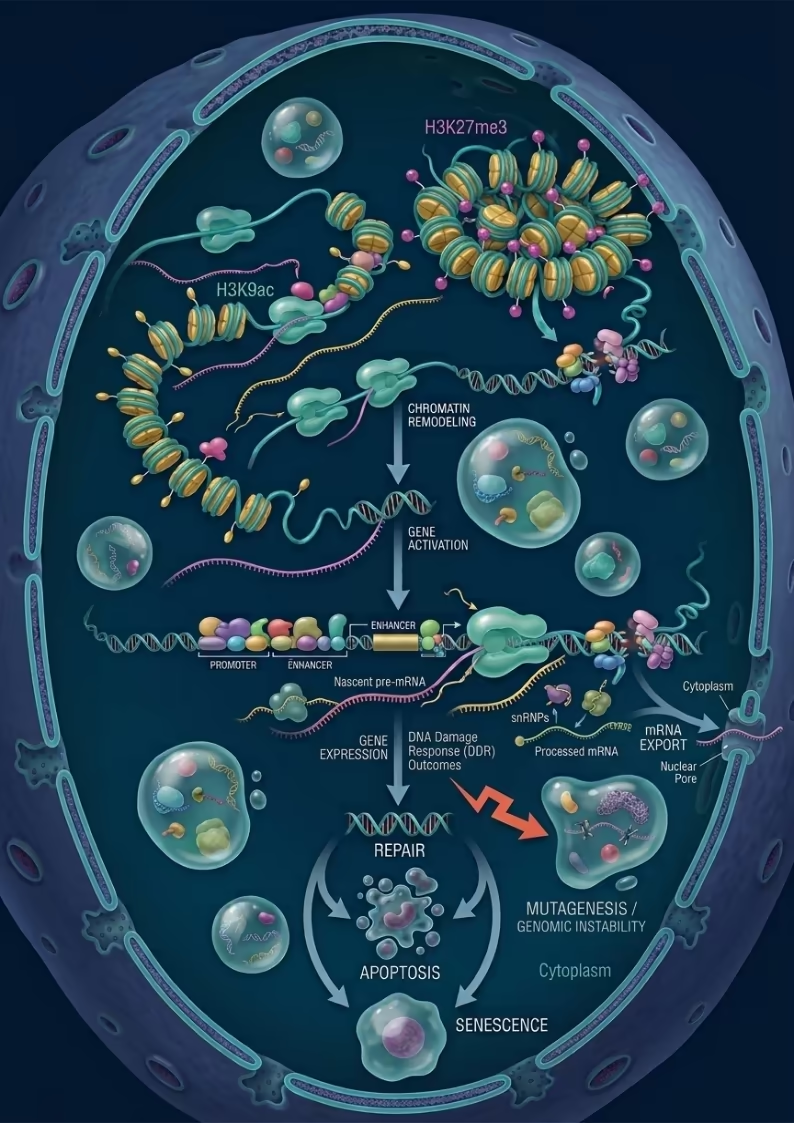
In sintesi:La cellula è la più piccola unità biologica autonoma in grado di mantenere l'omeostasi, adattarsi e replicarsi, sebbene specifici citotipi terminali, come i neuroni o gli eritrociti maturi, perdano la capacità di dividersi. Oltre ai tradizionali network trascrizionali di regolazione genica, l'epigenetica, il rumore stocastico e il microambiente circostante guidano il differenziamento nei tessuti. Quando il genoma subisce un danno, la risposta al danno del DNA (DDR) non si limita ad alternare riparazione corretta, apoptosi (morte programmata) e senescenza: se la riparazione ad alta fedeltà fallisce, la cellula può sopravvivere attivando vie imprecise e accumulando mutazioni. È proprio questo l'innesco primario dell'instabilità genomica e della progressione neoplastica.

GERARCHIA STRUTTURALE, STOCASTICITÀ E MICROAMBIENTE

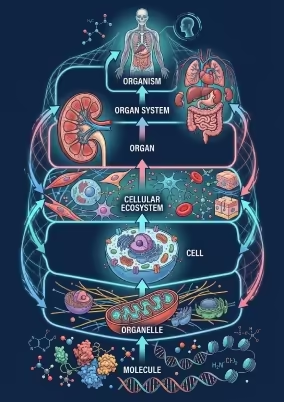
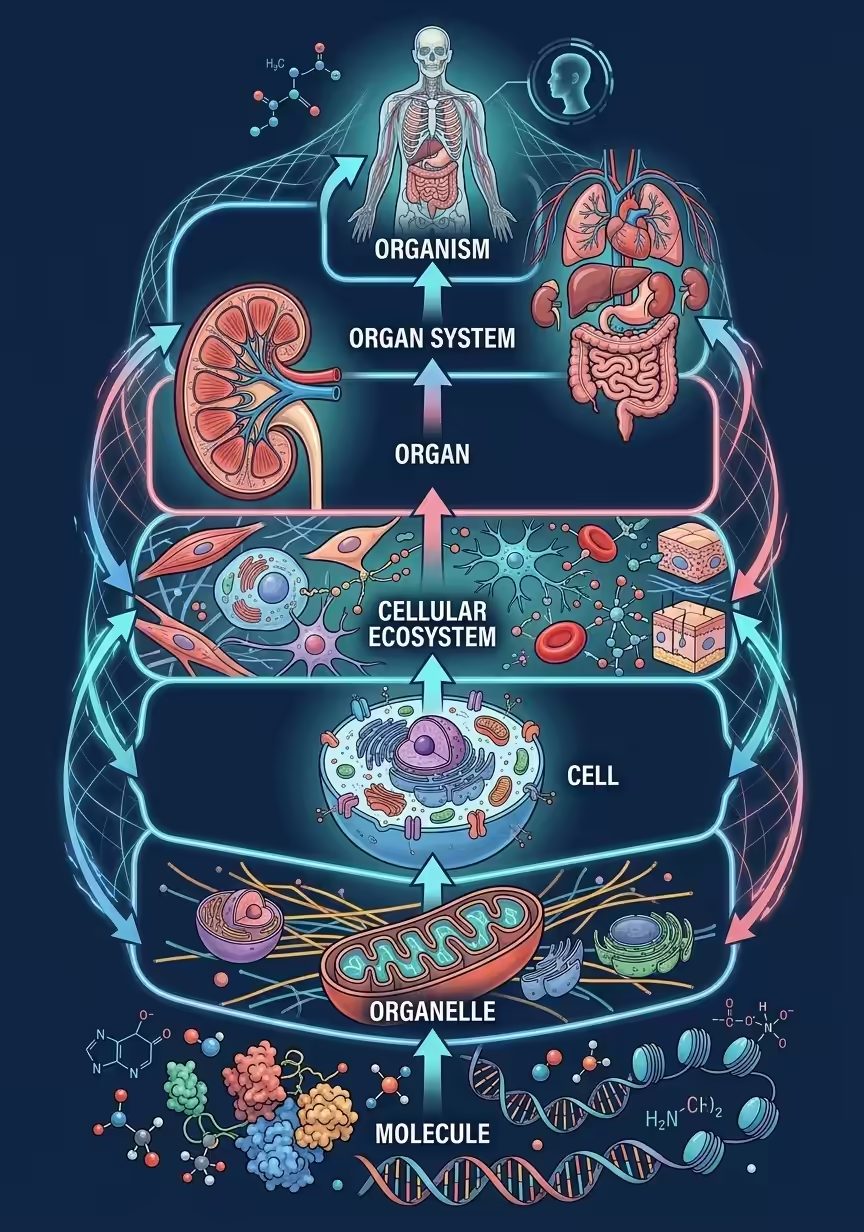
La cellulacostituisce l'unità morfologica, funzionale e biochimica elementare di ogni organismo vivente. In quanto sistema termodinamicamente aperto operante in uno stato stazionario fuori dall'equilibrio, mantiene la propria organizzazione interna mediante il costante flusso di materia ed energia, la regolazione metabolica fine e la replicazione autonoma. Per soddisfare la complessità fisiologica degli organismi pluricellulari, le popolazioni cellulari si organizzano in un'architettura gerarchica altamente integrata: l'interazione coordinata tra cellule specializzate costituisce i tessuti, i quali si assemblano strutturalmente e funzionalmente a formare ORGANI, APPARATI E SISTEMI.

Il proteoma e il profilo di espressione genica guidato da network trascrizionali specifici ed epigeneticidirigono il differenziamento di oltre 200 citotipi nel corpo umano, garantendo la coordinazione di funzioni fisiologiche ad alta specializzazione molecolare:

Filtra Fisiologia:
  1. Inotropismo ed eccitabilità cardiaca:Generazione di forza contrattile nel miocardiocita guidata dall'accoppiamento eccitazione-contrazione (CICR, Calcium-Induced Calcium Release) e dal transito di Ca2+attraverso i canali voltaggio-dipendenti di tipo L (Cav1.2);
  2. Trasduzione e computazione neurale:Genesi e propagazione saltatoria dei potenziali d'azione lungo la membrana assonica tramite canali del Na+e K+voltaggio-dipendenti, combinata alla modulazione neurotrasmettitoriale delle sinapsi centrali;
  3. Ultrafiltrazione renale:Mantenimento dell'omeostasi idro-elettrolitica e del volume plasmatico mediante la barriera di filtrazione glomerulare costituita dall'endotelio fenestrato, dalla membrana basale glomerulare e dai podociti;
  4. Omeostasi ed elasticità epiteliale:Continuo turnover tissutale sostenuto da nicchie di cellule staminali adulte e mantenimento della funzione barriera selettiva mediante giunzioni occludenti ed ancoranti.

RESEARCH INSIGHT | Epigenetica e Sistemi Stocastici (Single-Cell)

EXPLORER LIVE (apre la banca dati Single-Cell su Human Cell Atlas in una nuova scheda)

Oltre ai fattori di trascrizione canonici, l'identità cellulare è governata dall'epigenoma: la metilazione del DNA (isole CpG), le modificazioni post-traduzionali degli istoni (es. H3K9ac per l'eucromatina e H3K27me3 per l'eterocromatina facoltativa) e gli RNA non codificanti (miRNA, lncRNA) guidano la plasticità fenotipica senza alterare la sequenza primaria.

Inoltre, la biologia moderna riconosce la cellula come un sistema stocastico. La variabilità trascrizionale tra cellule geneticamente identiche (gene expression noise) non è un errore, ma un meccanismo adattativo chiave (es. resistenza eterogenea ai farmaci in oncologia), oggi esplorato ad alta risoluzione tramite la sequenziazione su singola cellula (scRNA-seq).

AUTORINNOVAMENTO CELLULARE, DNA DAMAGE RESPONSE (DDR) E SENESCENZA

In linea con i principi cardine della biologia molecolare, le cellule somatiche originano esclusivamente dalla divisione di elementi preesistenti. La proliferazione cellulare avviene mediante MITOSI, un processo di divisione equazionale finemente orchestrato dalle chinasi ciclina-dipendenti (CDK) e dai relativi checkpoint del ciclo cellulare (G1/S, Intra-S e G2/M, supervisionati dagli oncosoppressori molecolari p53 e pRb). Questo network regolatorio assicura la replicazione semiconservativa ad alta fedeltà del DNA e la corretta segregazione dei cromatidi fratelli tramite il fuso mitotico, preservando l'integrità del cariotipo e la stabilità genomica nelle cellule figlie.

RESEARCH INSIGHT | Meccanismi di Riparazione (DDR) e Fate Cellulare

PATHWAY EXPLORER (apre il diagramma molecolare su KEGG in una nuova scheda)

In presenza di lesioni al genoma, la cellula attiva la risposta al danno del DNA (DDR, DNA Damage Response) ingaggiando pathway specifici di riparazione:

  • Rotture a doppio filamento (DSB):Riparate via Homologous Recombination(HR, ad alta fedeltà in fase S/G2) o Non-Homologous End Joining(NHEJ, rapido ma prono a errori);
  • Danni puntuali:Gestiti da Base Excision Repair(BER) e Mismatch Repair(MMR).

Se il danno supera la soglia critico-riparativa o in caso di erosione telomerica, l'asse p53/p21 induce l'attivazione dell'apoptosio della senescenza cellulare. Tuttavia, se i meccanismi di controllo o i pathway ad alta fedeltà (come l'HR) vengono elusi o falliscono, la cellula può sopravvivere ricorrendo a riparazioni imprecise (es. NHEJ o polimerasi di translesione): l'accumulo di queste mutazioni diventa il motore dell'instabilità genomica. Parallelamente, le cellule senescenti, pur arrestando il ciclo mitotico, secernono il fenotipo SASP(Senescence-Associated Secretory Phenotype), una miscela pro-infiammatoria di citochine e metalloproteasi che altera il microambiente e promuove la progressione neoplastica.

LA CELLULA: ARCHITETTURA MOLECOLARE E MEMBRANA PLASMATICA

In sintesi:La Teoria Cellulare sancisce la cellula come unità fondamentale della vita, scaturita esclusivamente da eventi di divisione di elementi preesistenti. Tutti gli organismi condividono un'architettura molecolare primaria costituita da citosol, genoma a DNA, ribosomi e un doppio strato fosfolipidico anfipatico. Negli eucarioti, la compartimentazione mediante organuli membranosi racchiusi da bilipid-layer, l'asimmetria lipidica, la dinamica dei lipid rafts e la coordinazione con il citoscheletro (picket-fence model) regolano finemente la compartimentazione e dinamica di membrana, i gradienti elettrochimici e le vie di segnalazione molecolare.

I POSTULATI DELLA TEORIA CELLULARE E COMPONENTI UNIVERSALI

L’integrazione delle evidenze microscopiche e biochimiche formulate da Schleiden, Schwann e Virchow ha condotto alla definizione formale della Teoria Cellulare. I suoi assiomi fondanti stabiliscono che:

  1. Unità morfologica e strutturale:Tutti gli organismi viventi sono costituiti da una o più cellule (unicellulari o pluricellulari) integrati in un'architettura autonoma;
  2. Unità funzionale e metabolica:La cellula rappresenta la più piccola entità biologica in cui avvengono i processi catalitici, la trasduzione dell'energia biochimica e le reazioni anabolico/cataboliche;
  3. Biogenesi e continuità genomica:Ogni cellula origina esclusivamente dalla divisione di una cellula preesistente (omnis cellula ex cellula), mediante trasmissione fedele del patrimonio genetico.

Indipendentemente dalla divergenza filogenetica, ogni forma di vita cellulare condivide quattro sistemi macromolecolari primari:

  • Citoplasma e Citosol:Fase liquida acquosa ad altissimo affollamento macromolecolare (macromolecular crowding, ~200-300 mg/mL di proteine), caratterizzata da un microambiente viscoso in cui avvengono le vie metaboliche centrali (es. glicolisi, via dei pentosi fosfati);
  • Membrana Plasmatica:Doppio strato idrofobico ad altissima resistenza elettrica e permeabilità selettiva, deputato alla compartimentazione chimico-fisica, alla generazione di potenziali elettrochimici di membrana e all'omeostasi ionica;
  • Genoma (DNA):Polimero bicatenario desossiribonucleotidico antiparallelo contenente l'informazione codificante e regolatoria, organizzato per la replica semiconservativa e la trascrizione;
  • Ribosomi:Complessi ribonucleoproteici supramolecolari dotati di attività ribozimica peptidil-trasferasica, catalizzatori fondamentali della traduzione dell'mRNA in catene polipeptidiche.

DIVERSIFICAZIONE STRUTTURALE: PROCARIOTI ED EUCARIOTI

La principale divergenza evolutiva e strutturale risiede nel grado di compartimentazione sub-cellulare. I procarioti (domini Bacteriae Archaea) mantengono un'organizzazione priva di organuli membranosi interni, con genoma aploide circolare localizzato nella regione nucleoidea a diretto contatto con il citosol. Gli eucarioti (dominio Eukarya) hanno evoluto un complesso sistema di endomembrane, un nucleo delimitato da involucro a doppio bilayer porato e organuli bioenergetici e metabolici specializzati.

Parametro Bio-funzionaleDominio Procariotico (Bacteria / Archaea)Dominio Eucariotico (Eukarya)
Dimensioni Citometriche1 – 5 μm (elevato rapporto superficie/volume S/V, diffusione semplice rapida)10 – 100 μm (compartimentato; traffico vescicolare e trasporto attivo motore-dipendente)
Organizzazione GenomicaDNA circolare bicatenario superavvolto (DNA girasi/topoisomerasi IV) associato a proteine nucleoidi (NAPs, assenza di istoni canonici nei Bacteria)Cromosomi lineari multipli compattati in cromatina mediante ottameri istonici (H2A, H2B, H3, H4) ed istone H1; compartimentazione nucleare
Compartimentazione MembranosaAssente. I gradienti protonici (ΔμH+) e la fosforilazione ossidativa avvengono a livello della membrana plasmaticaAltamente sviluppata: Reticolo Endoplasmatico (RER/REL), Apparato di Golgi, Mitocondri, Lisosomi, Perossisomi
Sintesi Proteica (Ribosomi)Ribosomi 70S (subunità minore 30S [rRNA 16S + 21 proteine] + subunità maggiore 50S [rRNA 23S, 5S + 31 proteine])Ribosomi 80S (subunità minore 40S [rRNA 18S + ~33 proteine] + subunità maggiore 60S [rRNA 28S, 5.8S, 5S + ~49 proteine])
Composizione Parete/MembranaParete peptidoglicanica (mureina) nei Bacteria; eteri lipidici isoprenoidi ramificati negli ArchaeaMembrana ricca in esteri di glicerofosfolipidi, sfingolipidi e steroli (colesterolo negli animali, ergosterolo nei funghi)

RESEARCH INSIGHT | Organuli Senza Membrana e Separazione di Fase (LLPS)

Oltre alla compartimentazione classica delimitata da membrane fosfolipidiche, la biologia cellulare moderna ha dimostrato l'esistenza di organuli privi di membrana (es. nucleolo, granuli di stress, corpi P). Questi compartimenti dinamici si formano per separazione di fase liquido-liquido (LLPS, Liquid-Liquid Phase Separation)guidata da interazioni deboli e multivalenti tra proteine intrinsecamente disordinate (IDPs) e molecole di RNA, regolando processi chiave come la trascrizione e la risposta allo stress fisiologico.

BIOFISICA DELLA MEMBRANA E MODELLO A MOSAICO FLUIDO

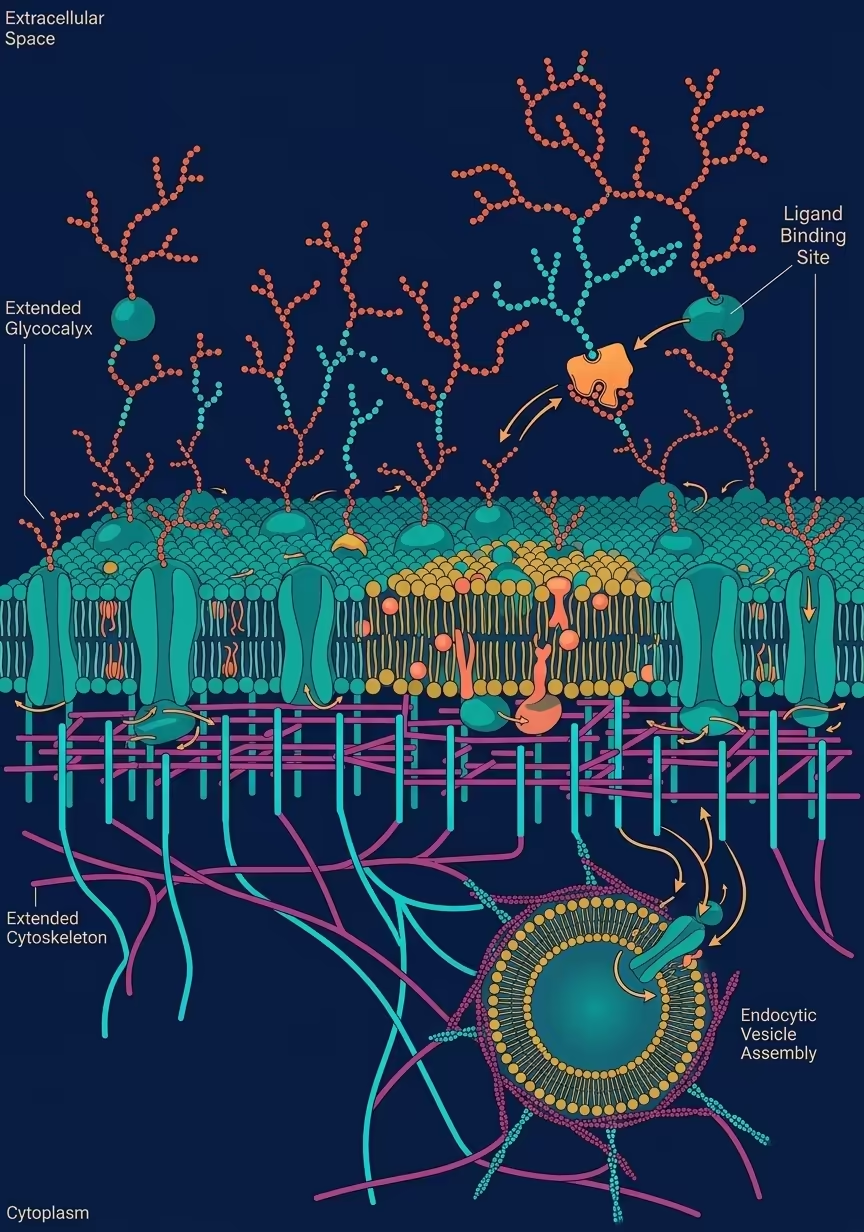
La membrana plasmaticasi struttura come una matrice fosfolipidica bilaminare fluida con uno spessore medio di ~7.5-10 nm. La sua architettura è dettata dalla natura anfipatica dei componenti lipidici: glicerofosfolipidi (es. fosfatidilcolina, fosfatidiletanolammina, fosfatidilserina, fosfatidilinositolo) e sfingolipidi (es. sfingomielina, glicosfingolipidi).

L'assemblaggio spontaneo del doppio strato è un processo guidato dall'effetto idrofobicoespresso in termini termodinamici (ΔG < 0): le "teste" zwitterioniche o cariche idrofile stabiliscono interazioni dipolo-dipolo e legami a idrogeno con la matrice acquosa esofacciale e citosolica, mentre le "code" apolari costituite da catene idrocarburiche alchiliche di acidi grassi vengono segregate all'interno. La segregazione riduce al minimo l'ordinamento strutturato delle molecole d'acqua circostanti (gabbie di clatrato), massimizzando l'entropia molecolare del sistema acquoso (ΔSsolvente> 0).

Sviluppato nel 1972 da S.J. Singer e G.L. Nicolson, il Modello a Mosaico Fluidodefinisce la membrana come un liquido bidimensionale viscoso e orientato, in cui proteine integrali monotopiche o politopiche e proteine periferiche si intercalano bidimensionalmente nel doppio strato. I lipidi e le proteine mostrano un'elevata dinamica molecolare caratterizzata da:

  • Diffusione laterale:Moti traslazionali bidimensionali rapidissimi (coefficiente di diffusione D ≈ 10-8cm2/s);
  • Rotazione:Spin assiale lungo il proprio asse longitudinale;
  • Transizione trasversale (Flip-Flop):Trasferimento di lipidi da un foglietto all'altro. Processo termodinamicamente svantaggiato (ΔG elevato a causa del passaggio della testa polare attraverso il core idrofobico) che necessita della catalisi di traslocasi ATP-dipendenti (flippasi[P4-ATPasi] per la traslocazione aminofosfolipidica verso il lato citosolico; floppasi[ABC-transporters] verso il lato esofacciale) o passive (scramblasiCa2+-dipendenti durante l'apoptosi o l'attivazione piastrinica).

La reologia e la visco-elasticità del bilayer sono regolate dalla temperatura di transizione di fase (Tm, da fase gel ordinata a fase liquido-cristallina disordinata). Tale parametro fisio-chimico è modulato dalla lunghezza delle catene alchiliche, dalla presenza di doppi legami cische introducono ripiegamenti sterici (kinks) riducendo le forze di Van der Waals tra catene adiacenti, e dall'azione omeostatica del colesterolo.

Il colesterolo agisce come un rigido tampone di fluidità (plasticizzante molecolare): mediante il suo nucleo steroideo rigido interfacciato con la porzione prossimale delle catene di acido grasso, impedisce l'eccessiva fluidificazione ad alte temperature riducendo la mobilità alchilica e, al contempo, ostacola l'impaccamento rigido e la cristallizzazione a basse temperature prevenendo lo stato di gel. Inoltre, l'interazione preferenziale tra colesterolo e sfingolipidi saturi promuove la segregazione di microdomini di membrana highly ordinati e resistenti ai detergenti non ionici, noti come zolle lipidiche (lipid rafts), piattaforme dinamiche fondamentali per il reclutamento di recettori e la modulazione della trasduzione del segnale.

RESEARCH INSIGHT | Asimmetria Transversale e Restrizioni Citoscheletriche (Picket-Fence)

Asimmetria Lipidica e Segnalazione:Il doppio strato fosfolipidico presenta una marcata asimmetria tra i due foglietti. Il foglietto esofacciale è ricco in fosfatidilcolina e sfingomielina, mentre quello citosolico concentra fosfatidilserina (PS) e fosfatidilinositolo-4,5-bisfosfato (PIP2). La perdita dell'asimmetria con l'esposizione della PS sul foglietto esterno funge da segnale di fagocitosi (eat-me signal) durante l'apoptosi.

Caveole e Meccanotrasduzione:Particolari invaginazioni della membrana ricche di colesterolo e sfingolipidi, denominate caveole, sono stabilizzate dalle proteine caveolinee cavitine. Agiscono come riserve di superficie per assorbire lo stress meccanico di membrana e come hub per l'endocitosi e la trasduzione del segnale.

Modello Picket-Fence (Pali di Recinzione):La libera diffusione laterale delle proteine e dei lipidi di membrana è delimitata dal citoscheletro corticale actinico sottostante. Le proteine ancorate all'actina agiscono come "pali" (pickets) e le maglie di actina come "recinzioni" (fences), creando micro-compartimenti in cui i lipidi e i recettori rimangono temporaneamente confinati (hop diffusion).

PERMEABILITÀ SELETTIVA, CITOSCHELETRO E COMPARTIMENTAZIONE ORGANELLARE

In sintesi:La compartimentazione cellulare garantisce un rigoroso controllo dei microambienti compartimentali ed endocellulari mediante barriere idrofobiche e trasportatori ad alta selettività. Il trasporto transmembrana regola i flussi ionici e nutrizionali mantenendo il potenziale elettrico di membrana a riposo (Vm). All'interno, una rete citoscheletrica altamente dinamica gestisce la biomeccanica, il traffico intracellulare e la divisione cellulare, mentre il sistema endomembranoso e gli organuli bioenergetici cooperano per coordinare anabolismo, catabolismo litico e la sintesi di ATP tramite fosforilazione ossidativa.

BIOFISICA DEI TRASPORTI E GLICOCALICE

La barriera idrofobica del bilayer fosfolipidico presenta una permeabilità altamente selettiva, quantificata dal coefficiente di permeabilità P(cm/s). Mentre gas apolari (O2, CO2, N2) e piccole molecole lipofile non cariche diffongono spontaneamente, ioni idratati (Na+, K+, Ca2+, Cl-) e soluti polari necessitano di proteine transmembrana. Il transito avviene secondo due modalità fondamentali:

  • Trasporto Passivo / Diffusione Facilitata:Processo esoergonico con variazione di energia libera negativa (ΔG< 0) privo di consumo diretto di ATP, guidato dal gradiente di concentrazione o dal potenziale elettrochimico transmembrana ΔμX, descritto dall'equazione del potenziale di equilibrio di Nernst:

    Eion=(R· T/ z· F) · ln([ion]est/ [ion]int)

    Il potenziale di membrana a riposo globale (Vm≈ −70 mV) tiene conto delle permeabilità relative dei singoli ioni (PK, PNa, PCl) mediante l'equazione di Goldman-Hodgkin-Katz (GHK):

    Vm=(R· T/ F) · ln( (PK[K+]est+ PNa[Na+]est+ PCl[Cl-]int) / (PK[K+]int+ PNa[Na+]int+ PCl[Cl-]est) )

    Sfrutta canali ionici regolati da voltaggio o ligando, trasportatori uniporti saturabili (cinetica di Michaelis-Menten: v=Vmax· [S] / (Km+ [S])) e le aquaporine (AQP), prive di transito protonico grazie ai motivi conservati Asn-Pro-Ala (NPA) e alla regione di selettività aromatico/arginina (ar/R).
  • Trasporto Attivo (Primario e Secondario):Processo endoergonico (ΔG> 0) che muove i soluti contro gradiente elettrochimico. Il trasporto attivo primario accoppia l'idrolisi dell'adenosina trifosfato (ATP → ADP + Pi) al lavoro di pompaggio. L'esempio cardine è la pompa Na+/K+-ATPasi (di classe P), che con un rapporto stechiometrico elettrogenico estromette 3 Na+ed importa 2 K+per ogni molecola di ATP idrolizzata:

    3 Na+int+ 2 K+est+ ATPint→ 3 Na+est+ 2 K+int+ ADPint+ Pi

    Il trasporto attivo secondario (simporti ed antiporti, come il cotrasportatore Na+/Glucosio SGLT-1) sfrutta l'energia potenziale accumulata nel gradiente di concentrazione del sodio (ΔμNa+) per guidare l'ingresso endoergonico di altri soluti.

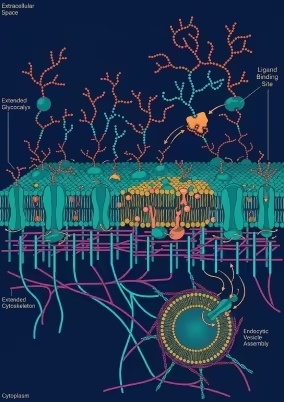
Sul versante esofacciale, le catene oligosaccaridiche di glicoproteine, proteoglicani e glicolipidi costituiscono il glicocalice. Questo strato polimerico idratato agisce come barriera biomeccanica e filtro sterico idrodinamico, oltre a mediare l'adesione cellulare via selectine, integrine e caderine. Esso espone le molecole del Complesso Maggiore di Istocompatibilità (MHC di Classe I e II)e gli antigeni di superficie, consentendo la sorveglianza immunologica, la self-ricognizione ed impedendo l'attivazione impropria del sistema del complemento.


ARCHITETTURA CITOSCHELETRICA E MOTILITÀ INTRACELLULARE

Il sostegno biomeccanico, la morfogenesi e la compartimentazione dinamica endocellulare sono garantiti dal citoscheletro, una matrice polimerica tridimensionale ed altamente interconvertibile articolata su tre filamenti proteici principali:

Sostegno PolimericoMonomeri, Diametro e Dinamica BiofisicaMotori Molecolari / AncoraggiFunzione Fisiologica Primaria
MicrofilamentiMonomeri di G-actina legati ad ATP che polimerizzano in F-actina elicoidale bipolare (∅ ~7 nm). Esibiscono una cinetica di treadmillingregolata dall'idrolisi dell'ATP legato alla subunità nel polo plus (+).Superfamiglia delle miosine (I, II, V) mediante scorrimento ATP-dipendente.Contrazione muscolare e non-muscolare, citodieresi (anello contrattile), migrazione cellulare (lamellipodi e filopodi), ancoraggio alle giunzioni aderenti e placche di adesione focale.
Filamenti IntermediTetrameri sfalsati apolari idrofobici di proteine fibrose (∅ ~10 nm): Cheratine, Vimentina, Desmina, GFAP, Neurofilamenti e Lamine nucleari A/B/C. Privi di polarità e privi di attività nucleotidica.Ancoraggio strutturale via placche giunzionali (Desmosomi mediante desmoplachine ed Emidesmosomi via integrine α6β4).Resistenza ad elevate sollecitazioni meccaniche da trazione, stabilizzazione della posizione degli organuli e architettura dell'involucro nucleare.
MicrotubuliEterodimeri di α- e β-tubulina polimerizzati in 13 protofilamenti cavi (∅ ~25 nm). Polarizzati (+/–). Sottoposti ad instabilità dinamica(transizioni tra accrescimento e catastrofe) regolata dall'idrolisi del GTP. Originano dal centrosoma (MTOC) via complesso γ-TuRC.Chinesine (trasporto anterogrado verso il polo +) e Dineine citoplasmatiche (trasporto retrogrado verso il polo –) accoppiate al complesso della dinactina.Traffico organellare e vescicolare, segregazione cromosomica tramite il fuso mitotico, architettura motile e battito di ciglia e flagelli (struttura assonemica 9+2 mediata da dineina assonemale).

RESEARCH INSIGHT | Biomeccanica Citoscheletrica e Contatti Inter-Organellari (MCS)

Meccanotrasduzione Citoscheletrica:Il citoscheletro non è solo una struttura portante passiva, ma una rete dinamica di trasmissione della forza. Tensioni meccaniche applicate alle integrine di superficie vengono trasmesse direttamente al nucleo attraverso il complesso LINC (Linker of Nucleoskeleton and Cytoskeleton: proteine SUN-Nesprina), modulando l'architettura della cromatina e l'espressione genica in risposta allo stress meccanico ambientale.

Siti di Contatto Inter-Organellare (MCS):Il traffico intracellulare non dipende esclusivamente da vescicole. Piattaforme prive di fusione denominate Membrane Contact Sites (MCS) collegano direttamente organuli vicini (es. MAM tra RER e mitocondri). Questi microdomini consentono il trasferimento diretto di calcio (Ca2+) e lipidi (es. fosfatidilserina), regolando la bioenergetica mitocondriale e la biogenesi delle membrane.


FLUSSO DEL TRAFFICO ENDOMEMBRANOSO

Il sistema di endomembrane costituisce una rete dinamica interconnessa tramite vescicole di trasporto gemmanti e ricoperte da mantelli proteici specifici (COPI, COPII, Clatrina). La selettività del targeting e della fusione di membrana è garantita da piccole GTPasi della famiglia Rab e da complessi recettoriali SNARE (v-SNARE su vescicola e t-SNARE su membrana bersaglio):

1. Biosintesi e Folding (RER)
Traslocazione e Controllo Qualità
Riconoscimento del peptide segnale via SRP, traslocazione cotraduzionale attraverso il canale Sec61 nel lume del RER. N-glicosilazione cotraduzionale (transfer dell'oligosaccaride Glc3Man9GlcNAc2) e controllo del folding mediato dalle chaperone (Calnexina/Calreticulina, BiP). Eliminazione delle proteine misfolded via ERAD (Endoplasmic-Reticulum-Associated Degradation). Vescicole rivestite da mantello COPII per il trasporto anterogrado verso il Golgi.
2. Processamento e Sorting (Golgi)
Maturazione e Indirizzamento Selettivo
Transito sequenziale attraverso i compartimenti cis, mediale trans-Golgi. Modificazione delle catene oligosaccaridiche (trimming del mannosio, O-glicosilazione su residui di Ser/Thr, solfatazione e fosforilazione). Nel trans-Golgi Network (TGN), smistamento terminale verso le destinazioni cellulari. Vescicole COPI regolano il traffico retrogrado verso il RER (recupero della sequenza C-terminale KDEL).
3a. Via Secretoria / Esocitosi
Membrana & Secrezione Esterna
Rilascio costitutivo (rinnovo lipoproteico di membrana) o regolato (stoccaggio in granuli di secrezione rilasciati previa stimolazione da Ca2+extracellulare, es. ormoni, neurotrasmettitori) mediante fusione azionata dal complesso v/t-SNARE.
3b. Via Endo-Lisosomiale
Compartimento Litico & Autofagico
Riconoscimento delle idrolasi contrassegnate con Mannosio-6-Fosfato (M6P) da parte del recettore MPR nel TGN. Gemmazione di vescicole rivestite da Clatrina ed adattatore AP-1, destinate alla fusione con gli endosomi tardivi ed i lisosomi.

ORGANULI CELLULARI: BIOENERGETICA ED OMEOSTASI

La coordinazione metabolica poggia sulla compartimentazione di reazioni specializzate all'interno di organuli sub-cellulari altamente evoluti:

  • Reticolo Endoplasmatico Liscio (REL):Rete tubulare priva di ribosomi. Presiede alla biosintesi di lipidi strutturali (fosfolipidi, colesterolo) e ormoni steroidei, alla metabolizzazione del glicogeno (tramite la glucosio-6-fosfatasi) e alla detossificazione di xenobiotici e farmaci apolari guidata dalle idrossilasi della famiglia del Citocromo P450. Nelle cellule muscolari costituisce il reticolo sarcoplasmatico, specializzato nel sequestro e rilascio rapido di Ca2+mediante pompe SERCA e recettori per la rianodina (RyR).
  • Mitocondri e Bioenergetica:Organuli endosimbiontici semiautonomi delimitati da una doppia membrana (esterna permeabile tramite porine, interna ripiegata in creste ad altissima resistenza elettrica e ricca di cardiolipina). Il lume matriciale racchiude un genoma circolare proprio (mDNA) e mitoribosomi 55S. Sede della decarbossilazione ossidativa del piruvato, della β-ossidazione degli acidi grassi e del ciclo di Krebs. I complessi respiratori della membrana interna (I, II, III, IV) trasferiscono elettroni all'ossigeno molecolare (O2) pompando protoni nello spazio intermembrana per generare la forza proton-motrice (Δp):

    ΔpΨm− (2.303 · R· T/ F) · ΔpH

    dove ΔΨmrappresenta il potenziale elettrico di membrana mitocondriale (≈ −160 / −180 mV) e ΔpH ≈ 0.5–1.0 unità di pH. Il flusso rientrante di protoni nella matrice aziona il motore rotazionale della FoF1-ATP Sintasi per la fosforilazione dell'ADP:

    ADP + Pi+ 4 H+intermembrana→ ATP + H2O + 4 H+matrice
  • Lisosomi e Perossisomi:I lisosomi sono vescicole cataboliche a singolo bilayer contenenti idrolasi acide (pH ≈ 4.5–5.0 mantenuto dal pompaggio attivo di protoni condotto da una v-ATPasi); svolgono un ruolo chiave in eterofagia, autofagia organellare (macroautofagia) e crinofagia. I perossisomi sono organuli ossidativi; utilizzano flavoproteine ossidasi producendo perossido di idrogeno (H2O2), eliminato dalla catalasi:

    2 H2O2→ 2 H2O + O2

    Svolgono inoltre la α- e β-ossidazione degli acidi grassi a catena molto lunga (VLCFA, C ≥ 22).
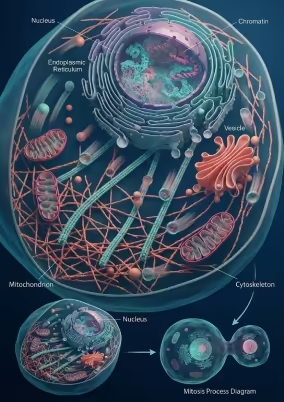
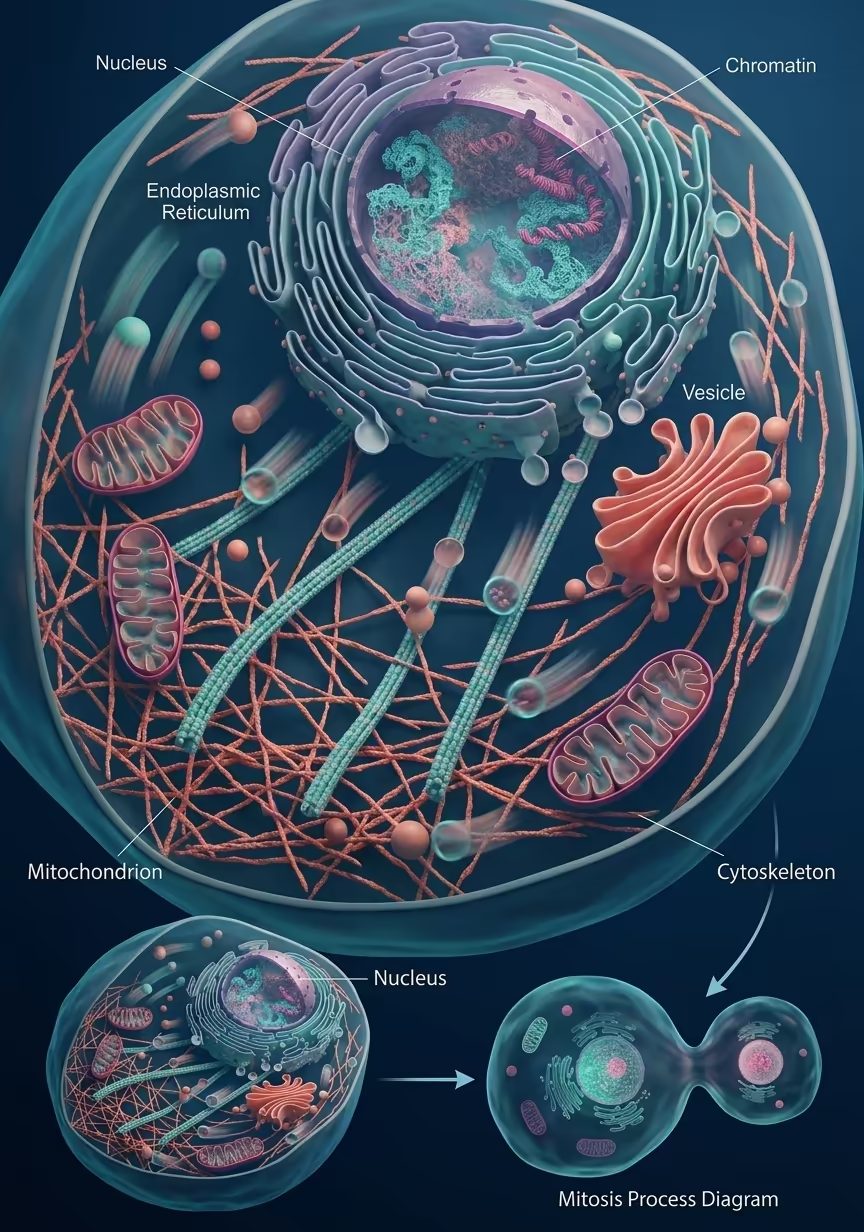
  • Nucleo Cellulare, Involucro Nucleare e Cromatina:Sede del genoma, separato dal citosol da un doppio bilayer interrotto dai Complessi del Poro Nucleare (NPC, costituiti da nucleoporine) che regolano il traffico nucleo-citoplasmatico guidato dalle GTPasi Ran (RanGAP/RanGEF). Racchiude il nucleolo e la cromatina: eucromatina(decondensata, trascritta attivamente, arricchita in H3K9ac e H3K4me3) ed eterocromatina(ipercondensata, silenziata, distinta in costitutiva o facoltativa e contrassegnata da H3K9me3 e H3K27me3).

DNA: ARCHITETTURA MOLECOLARE E CUSTODIA DELL'INFORMAZIONE GENETICA

In sintesi:L'acido desossiribonucleico (DNA) è un biopolimero informazionale a carattere polianionicola cui unità monomerica fondamentale è il NUCLEOTIDE. Nella conformazione fisiologica termodinamicamente favorita in soluzione acquosa (B-DNA), la macromolecola si struttura in una doppia elica destrorsacostituita da due catene polinucleotidiche antiparallele (con orientamento stereospecifico 5'→3' e 3'→5') avvolte attorno a un comune asse centrale.

Ciascun monomero nucleotidico si articola in tre domini biochimicamente distinti:

  • Impalcatura idrofilica esterna (Backbone Polianionico):
    • Gruppo fosfato esterificato al C-5' dello zucchero (totalmente ionizzato a pH fisiologico, conferisce una carica netta negativa equivalente e un forte potenziale elettrostatico di superficie)
    • Pentoso furanosico (2'-desossi-D-ribosio), con conformazione della gabbia dello zucchero al carbonio C2'-endotipica del B-DNA
  • Core interno idrofobico e basi eterocicliche:
    • Basi azotate eterocicliche legate via legame N-glicosidico β al C-1' in conformazione anti: Purine bicicliche [Adenina (A), Guanina (G)] e Pirimidine monocicliche [Citosina (C), Timina (T)]

RESEARCH INSIGHT | Polimorfismo Conformazionale, Dinamica dei Solchi e Modificazioni Epigenetiche

Polimorfismo Strutturale del DNA (A, B, Z):Oltre al classico B-DNA, il duplex può assumere la conformazione A-DNA(destrorsa, compattata, con puckering C3'-endo, favorita in condizioni di disidratazione e negli eteroduplex RNA-DNA) e la conformazione Z-DNA(sinistrorsa, allungata, con andamento a zig-zag del backbone, puckering alternato C3'-endo/C2'-endoe basi in conformazione syn/anti, favorita da sequenze alternate di purine/pirimidine CG e ipermetilazione).

Dinamica dei Solchi e Riconoscimento Proteico:Il solco maggiore(major groove) espone una sequenza altamente specifica di atomi e gruppi funzionali (donatori/accettori di legami H, gruppi metilici) che costituiscono un "codice di superficie" letto da fattori di trascrizione e domini di legame al DNA (es. zinc finger, helix-turn-helix). Il solco minore(minor groove) presenta minore variabilità di pattern elettrostatico ed è preferenzialmente riconosciuto da proteine che inducono curvatura o distorsione (es. TBP).

Epigenetica e Lesioni Chimiche:Le modificazioni covalenti delle basi, come la metilazione della citosina a 5-metilcitosina (5mC), alterano il profilo di lettura nel solco maggiore senza de-stabilizzare gli appaiamenti di Watson-Crick, regolando il silenziamento genico. Viceversa, lesioni chimiche come la deaminazione spontanea della citosina ad uracile o la formazione di dimeri di pirimidina da radiazione UV destabilizzano localmente lo stacking e richiedono l'attivazione dei sistemi di riparazione (BER, NER).

GENI, PROTEINE E CROMOSOMI: CONSERVAZIONE ED ESPRESSIONE DEL GENOMA

In sintesi:Il DNA genomicoorganizza l'informazione ereditaria in geni, unità funzionali che dirigono la trascrizione dell'RNA e la traduzione delle proteine. Negli eucarioti, il flusso dell'informazione dal gene al fenotipo si realizza mediante la compattazione della cromatina in cromosomi, garantendo la conservazione e la corretta trasmissione del patrimonio genetico.

I GENI COME UNITÀ INFORMAZIONALI FONDAMENTALI ED ARCHITETTURA DEL CISTRONE

Il genoma nucleare e mitocondrialegoverna l'omeostasi cellulare regolando la trascrizione temporo-spaziale delle sequenze informazionali. Un GENEè definibile come un segmento polinucleotidico continuo o discontinuo (intervallato da esoni ed introni negli eucarioti) provvisto di regioni regolatorie (promotori, enhancer, silencer) che codifica per un trascritto di RNA funzionale: RNA messaggero (mRNA), RNA transfer (tRNA), RNA ribosomiale (rRNA) o ncRNA regolatori (miRNA, lncRNA). Mediante il complesso traduzionale, l'mRNA viene convertito in una catena polipeptidica con una specifica struttura primaria. Le proteinederivate — enzimi catalitici, elementi del citoscheletro, recettori trasduttori e fattori di trascrizione — determinano la CINETICA METABOLICA, LA PROLIFERAZIONE E IL DIFFERENZIAMENTOdel citotipo.

Ciascuna specie ed individuo esprime uno specifico profilo proteomico (proteoma dinamico), risultante dal processamento post-trascrizionale (splicing alternativo) e dalle modificazioni post-traduzionali (fosforilazione, glicosilazione, ubiquitinazione), definendo in ultima analisi il fenotipo molecolare e la penetranza dei caratteri ereditari.


IL DOGMA CENTRALE DELLA BIOLOGIA MOLECOLARE E FLUSSO INFORMAZIONALE

Il Dogma Centrale descrive il trasferimento vettoriale e unidirezionale dell'informazione genetica tra biopolimeri sequenziali:

CROMOSOMI, CONDENSAZIONE ISTONICA ED ORGANIZZAZIONE DELLA CROMATINA

I CROMOSOMIrappresentano la massima condensazione sovramolecolare della cromatina, visibili durante la metafase mitotica o meiotica. In questa fase, il cromosoma duplicato è strutturato in due CROMATIDI FRATELLIidentici, tenuti uniti da complessi proteici di coesina e saldati a livello della regione strozzata primaria definita CENTROMERO, sede di assemblaggio del complesso macromolecolare del cinetocoreper l'aggancio dei microtubuli del fuso.

L'impalcatura dei cromosomi si fonda sulla cromatina, un complesso nucleoproteico dato dall'associazione del DNA con proteine basiche ad alta carica positiva (ISTONI H2A, H2B, H3, H4costituenti il core ottamerico del nucleosoma, ed ISTONE H1linker) e proteine non istoniche regolatorie. Questa sovrastruttura scala da nucleosomi "a filo di perle" (11 nm) fino a domini ad ansa (TADs) e strutture ad ordine superiore per la segregazione e la trasmissione ereditaria del genoma.

RESEARCH INSIGHT | Domini TADs, Inattivazione del Cromosoma X e Dinamica Cistronica

Organizzazione Tridimensionale del Genoma (TADs):L'architettura della cromatina interfasica non è casuale ma organizzata in Topologically Associating Domains (TADs), delimitati da complessi isolanti CTCF e coesina. All'interno di ciascun TAD, gli enhancer interagiscono fisicamente con i promotori target formando loop di trascrizione, impedendo l'attivazione impropria di geni in TADs adiacenti.

Inattivazione Epigenetica del Cromosoma X (XCI):Per garantire la compensazione del dosaggio genico tra i sessi (46,XX vs 46,XY), nei mammiferi femmina uno dei due cromosomi X viene casualmente inattivato durante l'embriogenesi precocissima. Il processo è guidato dall'ncRNA non codificante XIST, che riveste il cromosoma X destinato al silenziamento reclutando complessi repressori Polycomb (PRC1/PRC2), inducendo ipoacetilazione degli istoni, ipermetilazione dei CpG ed eterocromatizzazione condensata nel corpo di Barr.

Evoluzione della Definizione Molecolare di Gene:Dalla classica visione del cistrone mono-cistronico codificante proteina, le tecniche di sequenziamento RNA-Seq e mappatura ENCODE hanno rivelato che oltre l'80% del genoma umano è trascrittazionalmente attivo. Molti geni generano molteplici trascritti non codificanti ad azione regolatoria (lncRNA, circRNA) o subiscono trascritti chimerici trans-splicing, ridefinendo il gene come un'unità trascrizionale complessa e multifunzionale.

CARIOTIPO UMANO, CITOGENETICA E PLOIDIA GAMETICA

Il nucleo di ogni cellula somatica umana racchiude un genoma lineare lungo circa 2 metriorganizzato nel cariotipo diploide composto da 46 cromosomi distribuiti in 23 coppie di omologhi. Ciascuna coppia omologa condivide medesima sintenia, morfologia e loci genici occupati da alleli equivalenti o alternativi, di derivazione rispettivamente paterna e materna.

Le prime 22 coppiecostituiscono cromosomi non sessuali morfo-funzionalmente sovrapponibili definiti AUTOSOMI(ordinati numericamente da 1 a 22 in base alle dimensioni citogenetiche); la 23esima coppiaè costituita dagli ETEROCROMOSOMI o CROMOSOMI SESSUALI (GONOSOMI), che determinano il sesso biologico e il pattern di ereditarietà legata al sesso:

  • Maschio biologico: assetto eterogametico ed eteromorfo 46,XY
  • Femmina biologica: assetto omogametico ed omomorfo 46,XX

Mentre le cellule somatiche mantengono un assetto diploide (2n=46), le cellule germinali mature (gameti) presentano un corredo aploide (n=23)in modo da garantire la costanza del numero cromosomico di specie al momento della fecondazione.

DIVISIONE CELLULARE: MITOSI, MEIOSI E RIPRODUZIONE

In sintesi:La proliferazione cellulare si attua mediante due processi fondamentali finemente regolati dai complessi CDK-ciclina: la mitosi, divisione equazionale highly fedele che genera due cellule figlie diploidi clone-identiche per l'omeostasi e la rigenerazione tissutale, e la meiosi, divisione riduzionale caratteristica della linea germinale che riduce la ploidia da diploide ad aploide per generare gameti ricombinati mediante crossing-over. La successiva singamia (fecondazione)ripristina la diploidia nello zigote totipotente.

MITOSI E PROLIFERAZIONE DELLE CELLULE SOMATICHE

La proliferazione delle cellule somatiche avviene per divisione equazionale mitotica: la cellula progenitrice scinde il proprio patrimonio macromolecolare mediante la MITOSI, coordinata dall'attivazione del complesso MPF (CDK1/Ciclina B) e controllata dal checkpoint di assemblaggio del fuso (Spindle Assembly Checkpoint - SAC).

Questo ciclo di divisione garantisce la trasmissione fedele e cariotipicamente invariata del DNA alle due cellule figlie. Tale accuratezza si basa sulla duplicazione semiconservativa ad alta fedeltà della fase S e sull'interazione biomeccanica dei microtubuli cinetocorici con i centromeri nella piastra metafasica, seguita dalla degradazione proteasomica della securina e dalla scissione della cohesina mediata da separasi nell'anafase. La successiva citodieresi è guidata dal restringimento dell'anello contrattile di actina-miosina II regolato dalla GTPasi RhoA, ripartendo equamente il citosol e la rete organellare.

Sebbene la mitosi avvenga nelle cellule somatiche in grado di superare il punto di restrizione (G0/G1), la capacità replicativa varia radicalmente: dai citotipi perenni a differenziamento terminale alle cerchie di indifferenziati noti come cellule staminali. Esse mantengono una potenziale capacità di autorinnovamento mediante divisione asimmetrica, preservando la nicchia e originando progenitori transitori (transit-amplifying cells) destinati al differenziamento nei diversi compartimenti tissutali.


MEIOSI E GENERAZIONE DELLA VARIABILITÀ GENETICA

La linea germinale meiotica segue una via di scissione esclusiva delle cellule sessuali (gametociti primari) destinate alla gametogenesi (spermatogenesi ed ovogenesi): la MEIOSI.

Biologicamente, il ciclo meiotico consiste in due successive divisioni nucleari e cellulari (Meiosi I riduzionale e Meiosi II equazionale) precedute da una singola fase di replicazione del DNA. Questo ciclo trasforma una cellula germinale diploide (2n)in elementi funzionali a corredo genomico aploide (n).

La meiosi culmina nella formazione di quattro cellule figlie aploidi, dotate di un patrimonio genico unico e ricombinato. Durante la prolungata profase I (articolata nei sottostadi leptotene, zigotene, pachitene, diplotene e diacinesi), i cromosomi omologhi si appaiano forming tetradi stabilizzate dal complesso sinaptonemico. In questa fase avviene il crossing-over (ricombinazione omologa)catalizzato da endonucleasi ricombinative (es. SPO11), con rottura a doppio filamento e scambio fisico di segmenti di DNA non fratelli (visibili come chiasmi). Tale evento, unito all'orientamento casuale e all'assortimento indipendente delle coppie omologhe alla metafase I, costituisce il propulsore molecolare dell'evoluzione filogenetica e della diversità fenotipica intraspecifica.

RESEARCH INSIGHT | Checkpoints Molecolari, Non-Disgiunzione ed Omeostasi della Fecondazione

Checkpoint del Ciclo Cellulare e Tumorigenesi:La progressione nel ciclo cellulare è governata da varichi di controllo molecolari. Il checkpoint G1/S (punto di restrizione) risponde all'integrità del DNA via p53-p21 e fosforilazione di Rb da parte di CDK4/6-Ciclina D. Il checkpoint G2/M arresta la cellula in presenza di danni al DNA via chinasi ATM/ATR e Chk1/Chk2, inibendo la fosfatasi Cdc25. Il checkpoint SAC inibisce l'Anaphase-Promoting Complex (APC/CCdc20) finché tutti i cinetocori non sono legati sotto tensione amphitelica ai microtubuli.

Aneuploidie da Non-Disgiunzione Meiotica:Errori nella segregazione cromosomica durante la Meiosi I (mancata separazione degli omologhi) o la Meiosi II (mancata separazione dei cromatidi fratelli) generano gameti aneuploidi (n+1 o n−1). Alla fecondazione, questi provocano trisomie autosomiche (es. Trisomia 21 o Sindrome di Down, Trisomia 18) o monosomie (es. 45,X o Sindrome di Turner), con un'incidenza strettamente correlata all'aumento dell'età materna e al deterioramento della cohesina centromerica.

Dinamica Intracellulare del Blocco della Polispermia:Il legame dello spermatozoo al recettore ZP3 innesca una cascata trasduttiva mediata da Fosfolipasi C zeta (PLCζ), che genera oscillazioni di calcio (Ca2+) intracellulare. L'aumento del Ca2+determina la fusione dei granuli corticali con la membrana plasmatica e il rilascio exocitotico di enzimi modificatori (es. Ovastacina), che clavano ZP2 rendendo la zona pellucida refrattaria ad ulteriori attacchi espermatici.


RIPRODUZIONE SESSUALE E SINGAMIA

La meiosi rappresenta l'evento maturativo propedeutico obbligato per la riproduzione sessuale (anfimissi); la fusione gametica e la ricombinazione allelica incrementano l'eterozigosi ed eliminano mutazioni deleterie nel pool genico della popolazione.

Ciascun gamete apporta un set cromosomico aploide monocromatidico (n): l'ovocita secondariomaterno (bloccato in metafase II fino al contatto dello spermatozoo) e lo spermatozoopaterno flagellato. Il processo di fecondazione (singamia)prende avvio con il riconoscimento recettoriale zona-pellucida (ZP3), scatenando la reazione acrosomiale e il blocco rapido (depolarizzazione di membrana) e lento (reazione corticale ed esocitosi Ca2+-dipendente dei granuli) della polispermia. La fusione delle due membrane cellulari e la successiva cariogamia dei due pronuclei ripristina lo stato diploide (2n=46) nello zigote totipotente, innescando le prime divisioni di segmentazione dello sviluppo embrionale.

ORGANULI CELLULARI: STRUTTURA, BIOENERGETICA ED OMEOSTASI COMPARTIMENTALE

In sintesi: La compartimentazione cellulare si articola su tre assi fisiologici primari:

  • Flusso Genico ed Energetico:Nucleo e Mitocondri(organuli a doppia membrana) presiedono alla conservazione e trascrizione del genoma e alla sintesi di ATP tramite accoppiamento chemiosmotico.
  • Biosintesi e Traffico Vescicolare:Reticolo Endoplasmatico e Apparato del Golgicoordinano la traslocazione, il folding, le modificazioni post-traduzionali (glicosilazione) e lo smistamento delle biomolecole, gestendo al contempo le riserve di Ca2+.
  • Ossidazione, Clearance Litica e Redox:Perossisomi e Lisosomiregolano la β-ossidazione dei VLCFA, la neutralizzazione delle specie reattive dell'ossigeno (ROS) e i flussi autofagici ed eterofagici a pH acido.

1. COMPARTIMENTI A DOPPIA MEMBRANA: FLUSSO GENICO E BIOENERGETICA

NUCLEO CELLULARE
Organulo master delimitato da un involucro nucleare a doppia membrana fosfolipidica provvisto di complessi del poro nucleare (NPC) per il trasporto macromolecolare selettivo. Costituisce la sede primaria di conservazione e replicazione del genoma (DNA) e della trascrizione dell'RNA.

MITOCONDRIO
Organulo bioenergetico semiautonomo provvisto di mtDNA. Sede centrale del metabolismo aerobico, presiede alla produzione di ATP tramite β-ossidazione, ciclo degli acidi tricarbossilici (Krebs) e fosforilazione ossidativacondotta dai complessi della catena di trasporto degli elettroni sulla membrana interna. Partecipa attivamente all'omeostasi del Ca2+e all'innesco dell'apoptosi (rilascio del citocromo c).


2. SISTEMA DI ENDOMEMBRANE: BIOSINTESI, OMEOSTASI E TRAFFICO VESCICOLARE

RETICOLO ENDOPLASMATICO (R.E.)
Rete interconnessa di cisterne e tubuli integrata nel citoplasma, suddivisa in due domini morfologico-funzionali:

  • R.E. Rugoso (R.E.R.):Caratterizzato da ribosomi adesi al versante citosolico. Sede d'elezione per la traslocazione co-traduzionale e il folding assistito da chaperonedi proteine destinate alla secrezione o all'inserimento nelle membrane biologiche.
  • R.E. Liscio (R.E.L.):Struttura tubulare priva di ribosomi. Presiede alla biosintesi dei lipidi di membrana e degli ormoni steroidei. Funge da principale deposito e rilascio controllato di ioni Calcio (Ca2+)per la segnalazione cellulare ed esprime i complessi del citocromo P450 per la detossificazione epatica di xenobiotici.

APPARATO DEL GOLGI
Compartimento membranoso polarizzato (fasi cis, medialee trans) adibito alla maturazione e modificazione post-traduzionale delle biomolecole (O- e N-glicosilazione complessa). Smista e indirizza i flussi di vescicole provenienti dal R.E. verso la membrana plasmatica o la via endo-lisosomiale.


3. COMPARTIMENTI MONOMEMBRANA: REAZIONI OSSIDATIVE E CLEARANCE LITICA

PEROSSISOMA
Organulo monomembrana specializzato nei processi ossidativi. È il sito chiave per la β-ossidazione dei VLCFA e la biosintesi dei plasmalogeni. Produce perossido di idrogeno (H2O2) come sottoprodotto, prontamente convertito in H2O e O2dall'enzima catalasiper preservare l'omeostasi redox.

LISOSOMA
Compartimento litico a pH acido (~4.5–5.0) mantenuto da pompe protoniche V-type ATPasi. Sede del turnover e riciclo macromolecolare cellulare attraverso idrolasi acide:

  • Autofagia:Degradazione e riciclo di organuli danneggiati e complessi proteici endogeni.
  • Eterofagia e Fagocitosi:Digestione di materiale extracellulare ed eliminazione dei patogeni internalizzati.

RESEARCH INSIGHT | Interfacce MAMs, Dinamica di Fissione/Fusione, Traffico COPI/COPII ed Asse mTORC1-TFEB

Interfaccia MAMs e Omeostasi Metabolica:Le membrane del reticolo endoplasmatico e dei mitocondri interagiscono fisicamente tramite microdomini lipidici specializzati noti come MAMs (Mitochondria-Associated ER Membranes). Mediante complessi di tethering (es. VAPB-PTPIP51 e recettori IP3R-VDAC1/GRP75), le MAMs coordinano il trasferimento diretto di Ca2+e lipidi (es. fosfatidilserina), regolando la bioenergetica mitocondriale e la segnalazione pro-apoptotica.

Dinamica Mitocondriale e Qualità dell'Organello:I mitocondri non sono strutture statiche ma una rete dinamica regolata da eventi di fusione (mediati dalle GTPasi MFN1, MFN2 e OPA1) e scissione (guidata dalla GTPasi DRP1). La frammentazione mitocondriale consente di isolare le porzioni di rete depolarizzate, avviandole alla degradazione selettiva tramite mitofagia coordinata dalle vie PINK1/Parkin.

Regolazione del Traffico Vescicolare ed Asse Litico TFEB:Il trasporto retrogrado e anterogrado tra ER e Golgi è finemente regolato da mantelli vescicolari specifici: le vescicole rivestite da COPII gestiscono il trasporto anterogrado (ER→Golgi), mentre le vescicole COPI operano il recupero retrogrado (Golgi→ER). Nel compartimento lisosomiale, il fattore di trascrizione TFEB funge da master regulator della biogenesi lisosomiale e dell'autofagia; in presenza di nutrienti, mTORC1 fosforila TFEB sequestrandolo nel citosol, mentre il digiuno cellulare ne innesca la de-fosforilazione ed il caricamento nucleare per l'attivazione della rete CLEAR.

I TESSUTI BIOLOGICI E L'ORGANIZZAZIONE TISSUTALE

In sintesi:I tessuti costituiscono insiemi coordinati di cellule specializzateche cooperano per svolgere funzioni fisiologiche complesse, inseriti in un'impalcatura di supporto nota come matrice extracellulare (ECM). L'organismo umano riconosce quattro varietà tissutali fondamentali: epiteliale(barriere e rivestimenti), connettivo(sostegno, nutrizione e connessione), muscolare(generazione di forza e movimento) e nervoso(elaborazione e trasmissione di impulsi bioelettrici).

1. ORGANIZZAZIONE TISSUTALE E MATRICE EXTRACELLULARE

Un tessuto costituisce un livello di organizzazione biologica integrato, composto da un consorzio di cellule accomunate da origine embrionale, caratteristiche morfologiche e cooperazione funzionale. Tali popolazioni cellulari sono strutturate per mezzo della matrice extracellulare (ECM), un network macromolecolare di composizione chimica e consistenza estremamente variabile(da fluida nel sangue, a gel idratato nel connettivo molle, fino a mineralizzata nell'osso).


2. TESSUTO EPITELIALE: POLARITÀ, GIUNZIONI E AVASCOLARITÀ

Il tessuto epiteliale è caratterizzato da cellule strettamente adese con matrice intercellulare ridotta a sottili fessure. Tali cellule esibiscono una marcata polarità morfofunzionale, articolata in tre domini distinti:

  • Dominio Apicale:rivolto verso il lume o l'ambiente esterno; presenta specializzazioni come microvilli (assorbimento), ciglia mobili (propulsione) o stereociglia.
  • Dominio Laterale:preposto all'adesione e alla comunicazione intercellulare mediante complessi giunzionali.
  • Dominio Basale:ancorato alla membrana basale tramite emidesmosomi e contatti focali.
Tipologia GiunzionaleProteine TransmembranaAncoraggio CitoscheletricoFunzione Principale
Giunzioni Occludenti (Tight)Claudine, Occludine, JAMsMicrofilamenti di ActinaSigillatura dello spazio intercellulare; barriera paracellulare ad alta selettività.
Giunzioni Ancoranti (Desmosomi / Zonula Adhaerens)Caderine (Desmogleine, Desmocolline)Filamenti Intermedi (Cheratina) / ActinaResistenza agli stress meccanici e mantenimento della coesione tissutale.
Giunzioni Comunicanti (Gap)Connessine (organizzate in Connessoni)Nessuno (canale diretto)Accoppiamento elettrico e metabolico mediante passaggio diretto di piccoli ioni e molecole.

Il tessuto epiteliale poggia costantemente sulla membrana basale(struttura acellulare composta da lamina basale e lamina reticolare, ricca di collagene di tipo IV, laminina e perlecano). Poiché l'epitelio è completamente avascolare, la nutrizione e l'ossigenazione avvengono per diffusione passiva dai letti capillari situati nel tessuto connettivo sottostante (tonaca propria o derma).


3. CLASSIFICAZIONE ISTOLOGICA DEGLI EPITELI DI RIVESTIMENTO

Gli epiteli di rivestimento vengono classificati in base alla morfologia delle cellule del piano superficialee al numero degli strati cellularicomponenti.

ClassificazioneMorfologia / StrutturaSedi Anatomiche PrincipaliSpecializzazione Funzionale
Semplice PavimentosoSingolo strato di cellule appiattite.Alveoli polmonari, endotelio vascolare, sierose (mesotelio).Diffusione rapida di gas, filtrazione e riduzione dell'attrito.
Semplice Cubico / IsopristicoSingolo strato di cellule con altezza pari alla larghezza.Tubuli renali, dotti escretori ghiandolari, superficie ovarica.Secrezione e assorbimento attivo.
Semplice Cilindrico / AnisopristicoCellule allungate con nuclei basali; modificate con microvilli o ciglia.Mucosa gastrica e intestinale, tube uterine.Assorbimento di nutrienti, secrezione di muco e trasporto mucociliare.
PseudostratificatoMonostratificato reale; nuclei ad altezze sfalsate simulano il pluristratificato.Vie aeree superiori (trachea, bronchi), epididimo.Protezione, secrezione e rimozione del particolato tramite ciglia.
Composto Pavimentoso (Pluristratificato)Molteplici strati; suddiviso in cheratinizzato e non cheratinizzato.Epidermide (cheratinizzato); cavità orale, esofago, vagina (non cheratinizzato).Protezione avanzata contro usura meccanica, disidratazione e agenti patogeni.
Di Transizione (Urotelio)Pluristratificato plastico; varia forma in base al grado di distensione organica.Vescica urinaria, ureteri, calici renali.Impermeabilità all'urina ed estensibilità meccanica.

FUNZIONI DEGLI EPITELI E ARCHITETTURA DEL TESSUTO CONNETTIVO

In sintesi:Gli epiteli formano barriere selettive avascolari di rivestimento e parenchimi ghiandolari specializzati per la secrezione (esocrina ed endocrina). Il tessuto connettivofornisce sostegno trofomeccanico ed immunologico, caratterizzandosi per l'abbondante matrice extracellulare (ECM)idratata e rinforzata da fibre proteiche, che si specializza nei tessuti propriamente detti (lasso e denso), cartilaginei, adiposi ed ossei.

1. FUNZIONI E ORGANIZZAZIONE DEGLI EPITELI DI RIVESTIMENTO

Privi di vascolarizzazione diretta e poggianti su una membrana basale(strato acellulare di collagene IV e laminina che li separa dal connettivo), gli epiteli ricevono nutrimento per diffusione dai capillari connettivali. Essi rivestono la superficie corporea esterna (l'epidermide, epitelio pavimentoso stratificato cheratinizzato), le cavità comunicanti con l'esterno (epitelio della tonaca mucosaadibito ad assorbimento e secrezione), i vasi sanguigni e linfatici (endoteliomonostratificato che regola gli scambi metabolici) e le cavità sierose chiuse (mesoteliodi pleura, pericardio e peritoneo).

Il differenziamento citologico, il numero degli strati e la morfologia cellulare determinano le specifiche proprietà funzionali dell'epitelio (protezione meccanica, assorbimento selettivo, secrezione, barriera chimico-fisica o transito molecolare).


2. EPITELI GHIANDOLARI (ESOCRINI ED ENDOCRINI)

Gli epiteli ghiandolari costituiscono parenchimi specializzati nell'anabolismo e nella secrezione regolata di sostanze biologicamente attive (secreti). Possono organizzarsi come elementi unicellulari isolati (es. cellule mucipare caliciformi) o strutturare complesse ghiandole pluricellulari.

In base alla via di estrusione e alla destinazione del secreto, le ghiandole si classificano in:

  • Ghiandole esocrine:riversano il secreto all'esterno o nel lume di organi cavi tramite dotti escretori. Si classificano in base alla modalità di secrezione in merocrine(esocitosi pura), apocrine(distacco del dominio apicale) e olocrine(disintegrazione apoptotica dell'intera cellula).
  • Ghiandole endocrine:prive di dotti escretori, rilasciano i propri messaggeri chimici (ormoni) direttamente nel liquido interstiziale affinché diffondano nei capillari fenestrati verso organi bersaglio distanti. Presentano un'organizzazione prevalentemente cordonale(es. surrene, ipofisi) o follicolare(es. tiroide).

3. TESSUTO CONNETTIVO E MATRICE EXTRACELLULARE (ECM)

Il tessuto connettivo è caratterizzato dalla prevalenza volumetrica della matrice extracellulare (ECM)rispetto alla frazione cellulare (fibroblasti, macrofagi e mastociti). L'ECM è costituita da una sostanza fondamentale amorfa— un idrogel viscoelastico ricco di acqua, glicosaminoglicani (GAGs carichi negativamente come l'acido ialuronico), proteoglicani e glicoproteine strutturali di adesione (fibronectina e laminina) — e da tre varietà di fibre proteiche: fibre collagene(elevata resistenza alla trazione), fibre reticolari(collagene III ad impalcatura stromale) e fibre elastiche(elastina e fibrillina ad estensibilità reversibile).

In base alla densità delle fibre, alla popolazione cellulare e al grado di mineralizzazione della matrice, il tessuto connettivo si differenzia nelle seguenti varietà:

  1. Connettivo propriamente detto:diviso in lasso(prevalenza di sostanza fondamentale, funzione trofica e di difesa) e denso(fitti fasci di collagene ad alta resistenza meccanica, regolare nei tendini o irregolare nel derma);
  2. Tessuto cartilagineo:matrice gelificata avascolare ricca di aggrecano e collagene II, specializzata nella resistenza alla compressione (ialina, elastica e fibrosa);
  3. Tessuto adiposo:connettivo specializzato costituito da adipociti uniloculari (bianco)per la riserva energetica o multiloculari (bruno)per la termogenesi (espressione di UCP-1);
  4. Tessuto osseo:matrice extracellulare mineralizzata da cristalli di idrossiapatite di calcio, strutturata in varietà compatta e spugnosa per il sostegno scheletrico e la riserva minerale.

TESSUTI SPECIALIZZATI: ADIPOSO E SISTEMA NERVOSO

In sintesi:Tra i connettivi specializzati, il tessuto adiposogoverna l'omeostasi energetica e termica nelle sue forme bianca e bruna. Il tessuto nervosocostituisce invece la rete integrata di comunicazione dell'organismo: sfrutta la bioelettricità di neuroni ed elementi glialiper convertire stimoli fisiologici in segnali chimico-elettrici propagati unidirezionalmente a livello delle sinapsi.

1. FUNZIONALITÀ TROFOMECCANICA E TESSUTO ADIPOSO (BIANCO E BRUNO)

Il tessuto connettivo assicura la coesione metabolica ed il supporto meccanico all'organismo, mediando gli scambi trofici per i tessuti avascolari e garantendo una barriera difensiva immunologica attiva tramite popolazioni leucocitarie residenti e migranti.

Una forma altamente specializzata di connettivo è il tessuto adiposo, costituito da cellule endocrine e metaboliche denominate adipociti, la cui funzione primaria è l'accumulo di lipidi (prevalentemente trigliceridi) sotto forma di gocce lipidiche citoplasmatiche. Si suddivide in due tipologie strutturali e funzionali distinte:

  • Tessuto Adiposo Bianco (Uniloculare):caratterizzato da una singola grande goccia lipidica che confina il nucleo e il citoplasma alla periferia cellulare. Funziona da riserva energetica primaria, isolante termico-meccanico e organo endocrino sistemico (secrezione di adipokine come la leptina).
  • Tessuto Adiposo Bruno (Multiloculare):composto da cellule ricche di goccioline lipidiche multiple e un elevato numero di mitocondri. È specializzato nella termogenesi senza brivido: dissipa il gradiente protonico mitocondriale producendo energia termica (calore) grazie all'espressione specifica della proteina disaccoppiante UCP-1 (Termogenina).

2. ORGANIZZAZIONE DEL TESSUTO NERVOSO E NEUROGENESI ADULTA

Il tessuto nervoso rappresenta una rete altamente integrata deputata alla ricezione, elaborazione e trasmissione delle informazioni bioelettriche. Si compone di due popolazioni cellulari fondamentali: le cellule eccitabili (neuroni) e la neuroglia (cellule gliali), quest'ultima essenziale per il sostegno trofico, strutturale, la mielinizzazione e la protezione omeostatica dei neuroni.

L'unità funzionale primaria è il neurone, strutturato anatomicamente nei seguenti domini:

  • Soma (o Pericario):il corpo cellulare contenente il nucleo ed i principali organuli metabolici;
  • Dendriti:prolungamenti ramificati afferenti deputati alla ricezione degli impulsi nervosi provenienti da altri neuroni o dall'ambiente;
  • Assone:un singolo prolungamento efferente, generalmente rivestito da una guaina mielinica isolante, preposto alla conduzione rapida del potenziale d'azione verso target periferici o centrali. I fasci di assoni organizzati con tessuti connettivi di rivestimento costituiscono i nervi periferici.

I neuroni altamente differenziati sono tradizionalmente considerati elementi perenni, bloccati stabilmente nella fase G0 del ciclo cellulare. Tuttavia, la neurobiologia moderna ha confermato la presenza di processi di neurogenesi adulta, guidati da cellule staminali neurali residenti in specifiche nicchie cerebrali microambientali (come la zona sottogranulare del giro dentato dell'ippocampo).


3. PROPRIETÀ BIOELETTRICHE E TRASMISSIONE SINAPTICA

La propagazione dell'impulso nervoso si basa su due proprietà biofisiche fondamentali della membrana neuronale:

  • Eccitabilità:la capacità di variare rapidamente il potenziale elettrico di membrana a riposo in risposta a stimoli chimico-fisici, convertendoli in potenziale d'azione;
  • Conducibilità:l'abilità di propagare in modo attivo ed auto-rigenerativo il potenziale d'azione lungo tutta la lunghezza della membrana assonica senza decremento d'ampiezza.

La comunicazione unidirezionale tra neuroni distinti o tra neuroni e cellule effettrici (muscolari o ghiandolari) avviene a livello di giunzioni funzionali specializzate denominate SINAPSI.

Nelle sinapsi chimiche, la depolarizzazione portata dal potenziale d'azione sul terminale presinaptico innesca l'ingresso di Ca2+ e la conseguente esocitosi di neurotrasmettitorinella fessura sinaptica. Il legame sequenziale di queste molecole segnale ai recettori specifici sulla membrana postsinaptica genera potenziali graduati (eccitatori o inibitori) coordinando finemente la rete neurale e l'integrazione sistemica dell'organismo.


Letteratura Scientifica & DOI

Riferimenti Scientifici e Bibliografia Molecolare

Fonti primarie peer-reviewed, landmark papers e banche dati internazionali utilizzate per la redazione del documento.

#Autori & AnnoTitolo & RivistaIdentificatore DOI / Link
1Singer, S. J., & Nicolson, G. L.
(1972)
The fluid mosaic model of the structure of cell membranes
Science, 175(4023), 720–731
10.1126/science.175.4023.720
2Kusumi, A., et al.
(2012)
Hierarchical architecture of the cell membrane: the 'picket-fence' model
Trends in Biochemical Sciences, 37(11), 509–517
10.1016/j.tibs.2012.08.004
3Shin, Y., & Brangwynne, C. P.
(2017)
Liquid-liquid phase separation in biology
Cell, 168(6), 1001–1016
10.1016/j.cell.2017.02.008
4Dixon, J. R., et al.
(2012)
Topological domains in mammalian genomes identified by analysis of chromatin interactions
Nature, 485(7398), 376–380
10.1038/nature11082
5Galupa, R., & Heard, E.
(2018)
Xist and the order of silencing
Genes & Development, 32(1), 89–100
PMID: 29358327
6Musacchio, A.
(2015)
The spindle assembly checkpoint in space and time
Biochemistry, 54(37), 5694–5704
10.1021/acs.biochem.5b00712
7Jackson, S. P., & Bartek, J.
(2009)
The DNA damage response: ten years after
Nature, 461(7267), 1071–1078
10.1038/nature08984
8Harms, M., & Seale, P.
(2013)
Brown and beige fat: development, function and therapeutic potential
Nature Medicine, 19(10), 1252–1263
10.1038/nm.3361
9GTEx Consortium
(2020)
Genotype-Tissue Expression (GTEx) Portal
Human Tissue Gene Expression Atlas
gtexportal.org
10Human Protein Atlas
(2023)
The Human Protein Atlas Project
Svenska Stiftelsen för Strategisk Forskning
proteinatlas.org
11BiotechProject Team
(2026)
Iniziativa Open Knowledge & Divulgazione Scientifica
Contributi e revisione voci enciclopediche su Wikipedia (IT)
wiki/Gitechnolo
Official badge: BiotechProject Accessibility Compliance - Triple-A Level

🔗 Segui Biotech Project su LinkedIn